Raquel Valdés Angues 1, ✉ , Yolanda Perea Bustos 2 Editores: Alexander Muacevic , John R. Adler
ID de producto: PMC10792266 ID de producto: 38234925
Abstracto
El cáncer es una enfermedad compleja y dinámica. Hanahan y Weinberg (2000) propusieron las “características distintivas del cáncer” como un conjunto de competencias biológicas que las células humanas adquieren a medida que progresan desde la normalidad hasta la transformación neoplásica. Estas competencias incluyen la autosuficiencia en la señalización proliferativa, la insensibilidad a las señales que suprimen el crecimiento y la vigilancia inmunitaria, la capacidad de evadir la muerte celular, lo que permite la inmortalidad replicativa, la reprogramación del metabolismo energético, la inducción de la angiogénesis y la activación de la invasión tisular y la metástasis. Subyacentes a estas competencias se encuentran la inestabilidad genómica, que acelera su adquisición, y la inflamación, que fomenta su(s) función(es). Además, el cáncer exhibe otra dimensión de complejidad: un repertorio heterogéneo de células huésped infiltrantes y residentes, factores secretados y matriz extracelular, conocido como microambiente tumoral, que a través de una relación dinámica y recíproca con las células cancerosas promueve la inmortalidad, la invasión local y la diseminación metastásica. Esta asombrosa complejidad exige cautela al recomendar a todas las personas con cáncer (o con antecedentes de cáncer) que reciban la pauta primaria de vacunación contra la COVID-19 más dosis de refuerzo adicionales. Además, dado que estos pacientes no participaron en los ensayos clínicos fundamentales, persiste una considerable incertidumbre sobre la eficacia y seguridad de la vacuna, así como sobre el riesgo de interacciones con terapias contra el cáncer, lo que podría reducir el valor y la inocuidad de cualquiera de los dos tratamientos médicos.
Tras revisar la bibliografía disponible, nos preocupa especialmente que ciertas vacunas contra la COVID-19 puedan generar un entorno protumorigénico (es decir, un entorno específico que podría provocar una transformación neoplásica) que predisponga a algunos pacientes oncológicos (estables) y supervivientes a la progresión, recurrencia o metástasis del cáncer. Esta hipótesis se basa en la plausibilidad biológica y el cumplimiento de la hipótesis de múltiples impactos de la oncogénesis (es decir, inducción de linfopenia e inflamación, disminución de la expresión de la enzima convertidora de angiotensina 2 (ECA2), activación de las cascadas oncogénicas, secuestro de proteínas supresoras de tumores, desregulación del sistema de unión a proteína cuádruplex ARN-G, alteración de las respuestas del interferón tipo I, desilenciamiento de elementos retrotransponibles, etc.), junto con la creciente evidencia y los informes de seguridad presentados al Sistema de Notificación de Efectos Adversos de las Vacunas (VAERS) que sugieren que algunos pacientes con cáncer experimentaron una exacerbación o recurrencia de la enfermedad tras la vacunación contra la COVID-19. En vista de lo anterior y debido a que algunas de estas preocupaciones (es decir, alteración de las vías oncogénicas, promoción de cascadas inflamatorias y desregulación del sistema renina-angiotensina) también se aplican a los pacientes con cáncer infectados con SARS-CoV-2, alentamos a la comunidad científica y médica a evaluar urgentemente el impacto tanto de la COVID-19 como de la vacunación contra la COVID-19 en la biología del cáncer y los registros de tumores, ajustando las recomendaciones de salud pública en consecuencia.
Palabras clave: oncogénesis, metástasis, recurrencia, malignidad, vacunas, glicoproteína de la espiga, SARS-CoV-2, COVID-19, cáncer
Introducción y antecedentes
Varias estimaciones y estudios de modelos destacan los millones de vidas que las vacunas contra la COVID-19 podrían haber salvado a nivel mundial [ 1-6 ] . Sin embargo, la crisis de la COVID-19 ha afectado negativamente la salud y el bienestar de muchas personas, en particular de las que viven con cáncer (es decir, la pandemia de la COVID – 19 interrumpió el acceso a la atención médica, pospuso las pruebas de detección del cáncer y los servicios de diagnóstico y terapéuticos, separó a los pacientes con cáncer de sus familiares y seres queridos, y se convirtió en una fuente adicional de estrés y angustia). Tres años después del inicio de la pandemia, las autoridades sanitarias siguen recomendando que las personas con cáncer activo y previo se vacunen contra la COVID-19 [ 7 ]. Se recomiendan las dosis de refuerzo [ 7 , 8 ] porque la eficacia de la vacuna disminuye con el tiempo [ 9 ] y algunos cánceres y tratamientos contra el cáncer afectan al sistema inmunitario, lo que hace que las vacunas sean menos eficaces [ 10 ]. Aunque los ensayos clínicos para las vacunas contra la COVID-19 pasaron por alto a los pacientes con cáncer [ 11-15 ] , se supone que quienes tienen un sistema inmunitario comprometido tienen un mayor riesgo de padecer una enfermedad grave, por lo que obtener incluso algo de protección de la vacuna es mejor que ninguna protección. Sin embargo, un creciente cuerpo de evidencia [ 16-21 ] sugiere que algunas personas con cáncer activo o previo experimentaron una exacerbación de la enfermedad después de la vacunación contra la COVID-19. Los informes registrados en el Sistema de Informes de Efectos Adversos de las Vacunas (VAERS) [ 22 ], un sistema nacional de vigilancia de la seguridad de las vacunas mediante autoinforme coadministrado por los Centros para el Control y la Prevención de Enfermedades (CDC) y la Administración de Alimentos y Medicamentos (FDA) de los EE. UU., también revelaron una asociación no causal entre la vacunación contra la COVID-19 (es decir, las vacunas basadas en ARNm) y el cáncer, en relación con otras vacunas [ 23 ] . Específicamente, Seneff et al. [ 23 ] se centraron en dos enfoques distintos. Uno de ellos consistía en recopilar los recuentos de cualquier término que contuviera palabras clave vinculadas al cáncer, a saber, “cáncer”, “linfoma”, “leucemia”, “metástasis”, “carcinoma” y “neoplasia”. En total, los investigadores encontraron 1474 entradas que vinculaban estos términos con las vacunas contra la COVID-19, lo que representa el 96 % de todas las entradas para cualquiera de estos términos para cualquier vacuna en ese año. El enfoque complementario fue encontrar términos relacionados con el cáncer en órganos específicos, a saber, mama, próstata, vejiga, colon, cerebro, pulmones, páncreas y ovarios. Aunque todos los números eran pequeños, los autores tabularon 534 casos de cáncer de órganos específicos vinculados a las vacunas contra la COVID-19, lo que representa el 97,3 % de todos los casos para cualquier vacuna en 2021 [ 23 ].
Aunque generalmente se entiende que las neoplasias malignas tardan meses o, más comúnmente, años en progresar, de modo que la existencia de una posible amenaza a largo plazo para la salud no puede determinarse por completo en la actualidad, algunos cánceres de progresión rápida y el despertar de células cancerosas latentes (DCC), que se asocia con la recurrencia del cáncer y la metástasis, son a menudo procesos agresivos que pueden detectarse rápidamente [ 24 , 25 ]. Identificar, comprender y, finalmente, prevenir estas posibles amenazas a la salud a mediano y largo plazo es de suma importancia. Hasta donde sabemos, la farmacovigilancia prospectiva y/o el monitoreo de los receptores vacunados frente a controles no vacunados emparejados no se han llevado a cabo en ensayos clínicos bien diseñados. Además, los registros de cáncer no recopilan rutinariamente estimaciones nacionales de recurrencia del cáncer, aunque la recurrencia no es infrecuente [ 26 ]. Para algunos cánceres, como el de próstata, existen fórmulas que pueden ayudar a estimar el riesgo de recaída según el estadio y otra información clínica [ 26 ]. Sin embargo, debido a que las tasas de recurrencia varían según las características del tumor, el estadio de la enfermedad y el tratamiento, no es posible predecir (sin datos representativos de la población) si el cáncer se erradicará por completo, excepto en retrospectiva. Por lo tanto, es fundamental que todos los sobrevivientes de cáncer participen en algún tipo de programa de vigilancia para asegurarse de que, si el cáncer regresa, esto se pueda detectar rápidamente. De igual relevancia es el uso de modelos animales para comprender las enfermedades y evaluar la seguridad de los medicamentos, las vacunas, los aditivos alimentarios y muchas otras sustancias. Según nuestra información, no existen modelos animales que ayuden a comprender el impacto de la vacunación contra la COVID-19 en los resultados clínicos de los pacientes con cáncer. El avance de la investigación sobre estos temas ayudará a las autoridades sanitarias a evaluar adecuadamente la relación riesgo/beneficio de la vacunación contra la COVID-19 en una población con mayor riesgo de resultados graves de COVID-19 [ 27 ], así como a extraer conclusiones más sólidas con respecto a la vacunación (o alternativas apropiadas) en personas diagnosticadas con cáncer o con antecedentes de cáncer previo.
En resumen, este artículo pretende destacar la necesidad apremiante de estudiar y comparar la incidencia de complicaciones del cáncer después de la vacunación contra la COVID-19 con la incidencia de eventos similares después de la infección por SARS-CoV-2 (en la población no vacunada). Se centra en las vacunas que promueven la producción endógena de la glicoproteína de la espícula (S) del SARS-CoV-2, a saber, las vacunas de ARNm (Pfizer/BioNTech y Moderna) y las vacunas vectorizadas por adenovirus (Johnson & Johnson y Oxford/AstraZeneca) [ 28 ]. Estos productos han sido, sin duda, los más utilizados en todo el mundo, incluso cuando se desarrollaron alternativas más convencionales (es decir, vacunas basadas en proteínas recombinantes y virus vivos y atenuados). Reconocemos que otros factores clínicos y sociales resultantes de la pandemia, como los efectos adversos relacionados con la infección por SARS-CoV-2 [ 29 , 30 ]; las pronunciadas disminuciones en la detección, el diagnóstico y el tratamiento del cáncer [ 31 ]; La adopción de conductas poco saludables (es decir, un mayor consumo de alcohol y una reducción de la actividad física) durante los largos confinamientos por la pandemia [ 32 ], el estrés inducido por la crisis de la COVID-19 [ 33 ] y la suposición de que millones de adultos permanecerán desempleados y sin seguro médico contribuirán de forma independiente a la mortalidad por cáncer en los próximos meses y años.
Una versión anterior de este artículo se publicó previamente en el servidor de preimpresiones de Authorea el 17 de octubre de 2023.
Revisar
Las vacunas basadas en la glicoproteína de la espícula del SARS-CoV-2, en particular las vacunas de ARNm, tienen el potencial de iniciar un conjunto de mecanismos biológicos que, en conjunto, pueden generar un entorno protumorigénico (transitorio) favorable para la progresión del cáncer o la reactivación de los DCC. Estos efectos adversos pueden atribuirse a la acción proinflamatoria de las nanopartículas lipídicas (LNP), la respuesta alterada del interferón (IFN) tipo I, la desregulación traduccional de los microARN celulares desencadenada por el ARNm estructuralmente modificado (vacunas de ARNm) o la naturaleza única, el patrón de expresión, el perfil de unión y los efectos proinflamatorios y tumorigénicos de los antígenos producidos, concretamente, la proteína de la espícula del SARS-CoV-2 o sus subunidades S1 y S2 (vacunas vectorizadas con ARNm y adenovirus) (Figura 1 ).
Figura 1. Mecanismos moleculares y vías promotoras del cáncer potencialmente mediadas por el SARS-CoV-2 y/o ciertas vacunas contra la COVID-19.
SARS-CoV-2: coronavirus del síndrome respiratorio agudo severo 2, COVID-19: coronavirus 2019, BRCA1/2: cáncer de mama 1/2, ECA2: enzima convertidora de angiotensina 2, LNP: nanopartículas lipídicas, ARN: ácido ribonucleico, IFN: interferón
Además, se han encontrado altos niveles de proteína espícula soluble y/o sus subunidades y fragmentos peptídicos en la circulación de personas vacunadas, donde persisten durante semanas o incluso meses. Por lo tanto, es plausible que la distribución sostenida y sistémica de la proteína espícula en el cuerpo humano (la proteína espícula viral, en la mayoría de los casos, no afecta a tejidos ni órganos distintos del tracto respiratorio) pueda promover diversas interacciones imprevistas con la enzima convertidora de angiotensina 2 (ECA2), el receptor de entrada del SARS-CoV-2, ya sea en su forma soluble circulante o expresada en células de diversos tejidos y órganos.
Por las razones expuestas, es imperativo comprender los efectos de la COVID-19 y la vacunación contra la COVID-19 sobre las células cancerosas y su microambiente.
La linfopenia es un sello distintivo tanto de la COVID-19 grave como de la vacunación contra la COVID-19.
La linfopenia, una afección definida por recuentos anormalmente bajos de linfocitos, es una característica de la COVID-19 grave en comparación con la enfermedad no grave [ 34-36 ] . Las posibles causas subyacentes de la linfopenia observada, especialmente la disminución en los recuentos de células T, incluyen la redistribución de células T en los órganos infectados, el agotamiento inducido por activación, la apoptosis y la piropoptosis [ 37 ]. Si bien el agotamiento de células T se observa en otras infecciones virales [ 38 ], parece ser más rápido, profundo y duradero en el contexto de la COVID-19. Un estudio reciente sugiere que es probable que la linfopenia en pacientes con COVID-19 grave sea el resultado de la infección por SARS-CoV-2 de las células T de una manera independiente de la espiga-ACE2 [ 39 ]. Además, se ha informado que la expresión de la espiga por sí sola es suficiente para inducir una rápida fusión de membranas para producir sincitio, un tipo de células grandes con múltiples núcleos que son negativos en moléculas de unión intercelular como la E-cadherina. Los sincitios tienden a internalizar linfocitos, lo que posiblemente contribuya a la pérdida de linfocitos en pacientes con COVID-19 [ 40 ].
La linfopenia también se ha asociado con la vacunación contra la COVID-19. Los ensayos clínicos de fase I/II con las vacunas BNT162b1 (Pfizer/BioNTech) [ 41 ] y ChAdOx1 (Oxford/AstraZeneca) [ 42 ] describieron una disminución dependiente de la dosis en los linfocitos plasmáticos 6-8 días después de la vacunación en el 45%-46% de los participantes. Consistentemente, dos prepublicaciones basadas en los programas de inmunización en Israel (vacuna BNT162b1) [ 43 ] e Inglaterra (vacunas BNT162b1 y ChAdOx1) [ 44 ] informaron un aumento inicial en el riesgo de infección hasta nueve días después de la vacunación. No obstante, se ha demostrado que los linfocitos T específicos de los antígenos virales del SARS-CoV-2 aumentan en última instancia después de la inmunización con vacunas genéticas (es decir, células T específicas de la espiga) y plataformas tradicionales como la vacuna contra la COVID-19 COH04S1 basada en el virus vaccinia modificado multiantígeno Ankara (MVA) (es decir, células T específicas de membrana, nucleoproteína y espiga) [ 45 , 46 ].
Aunque los mecanismos moleculares que subyacen a la linfopenia tanto en la infección por COVID-19 como en la vacunación no se comprenden completamente, la linfopenia se ha asociado durante mucho tiempo con una mayor incidencia de cáncer y riesgo de malignidad [ 47 ]. Las alteraciones de los linfocitos son frecuentes en pacientes con cáncer y tienen un fuerte impacto en el pronóstico y la supervivencia [ 47 , 48 ]. La linfopenia grave de células T CD4+ es uno de los sellos distintivos de la infección por el virus de la inmunodeficiencia humana (VIH). Las personas que tienen VIH/SIDA tienen un mayor riesgo de desarrollar ciertos tipos de tumores (es decir, sarcoma de Kaposi) que las personas sin la enfermedad [ 49 – 51 ]. Las células T CD8+ tienen una función crucial en la latencia inmunomediada, y su agotamiento libera los frenos de los DCC, lo que lleva a un crecimiento metastásico [ 52 , 53 ]. La inmunosupresión inducida por anestésicos puede promover recaídas de cáncer dependiendo de la dosis, la duración y el momento de uso [ 54 ]. La exposición a fármacos inmunosupresores que previenen el rechazo de órganos en receptores de trasplantes de órganos perjudica la vigilancia del cáncer y facilita la acción de virus oncogénicos, aumentando el riesgo postrasplante de complicaciones neoplásicas [ 55 ]. Análogamente, los receptores de trasplantes de órganos que aceptan un órgano de un donante superviviente de cáncer podrían desarrollar malignidad porque la exposición a los fármacos inmunosupresores permite que las metástasis latentes ocultas (trasplantadas con el órgano) cobren vida [ 56 ]. Cabe destacar que el 25% de los cánceres que se desarrollaron en pacientes con trasplantes de órganos experimentan una remisión clínica cuando la dosis administrada del fármaco inmunosupresor se reduce drásticamente [ 57 ]. Notablemente, algunos tipos de tratamiento del cáncer, como la quimioterapia, la radiación y la combinación de quimioterapia e inmunoterapia, también pueden causar linfopenia grave, que se correlaciona con una supervivencia reducida [ 47 , 58 , 59 ].
Dado que la linfopenia, junto con factores relacionados con la inflamación (descritos a continuación), contribuye a la creación de un microambiente favorable para la progresión del cáncer o la reactivación de los DCC, se requiere extrema precaución al recomendar la vacunación contra la COVID-19 (hasta cinco dosis) [ 8 ] a pacientes oncológicos, especialmente a aquellos que reciben tratamiento contra el cáncer. Estudios exhaustivos sobre los mecanismos moleculares que conducen a la reducción general de linfocitos, tanto en pacientes con COVID-19 como en vacunados, deberían ayudar a identificar mejores estrategias de vacunación o intervenciones alternativas que prevengan esta importante anomalía inmunológica y sus consecuencias.
La glicoproteína de pico del SARS-CoV-2 y su subunidad S1 provocan una señalización celular in vitro que podría favorecer la tumorigénesis in vivo.
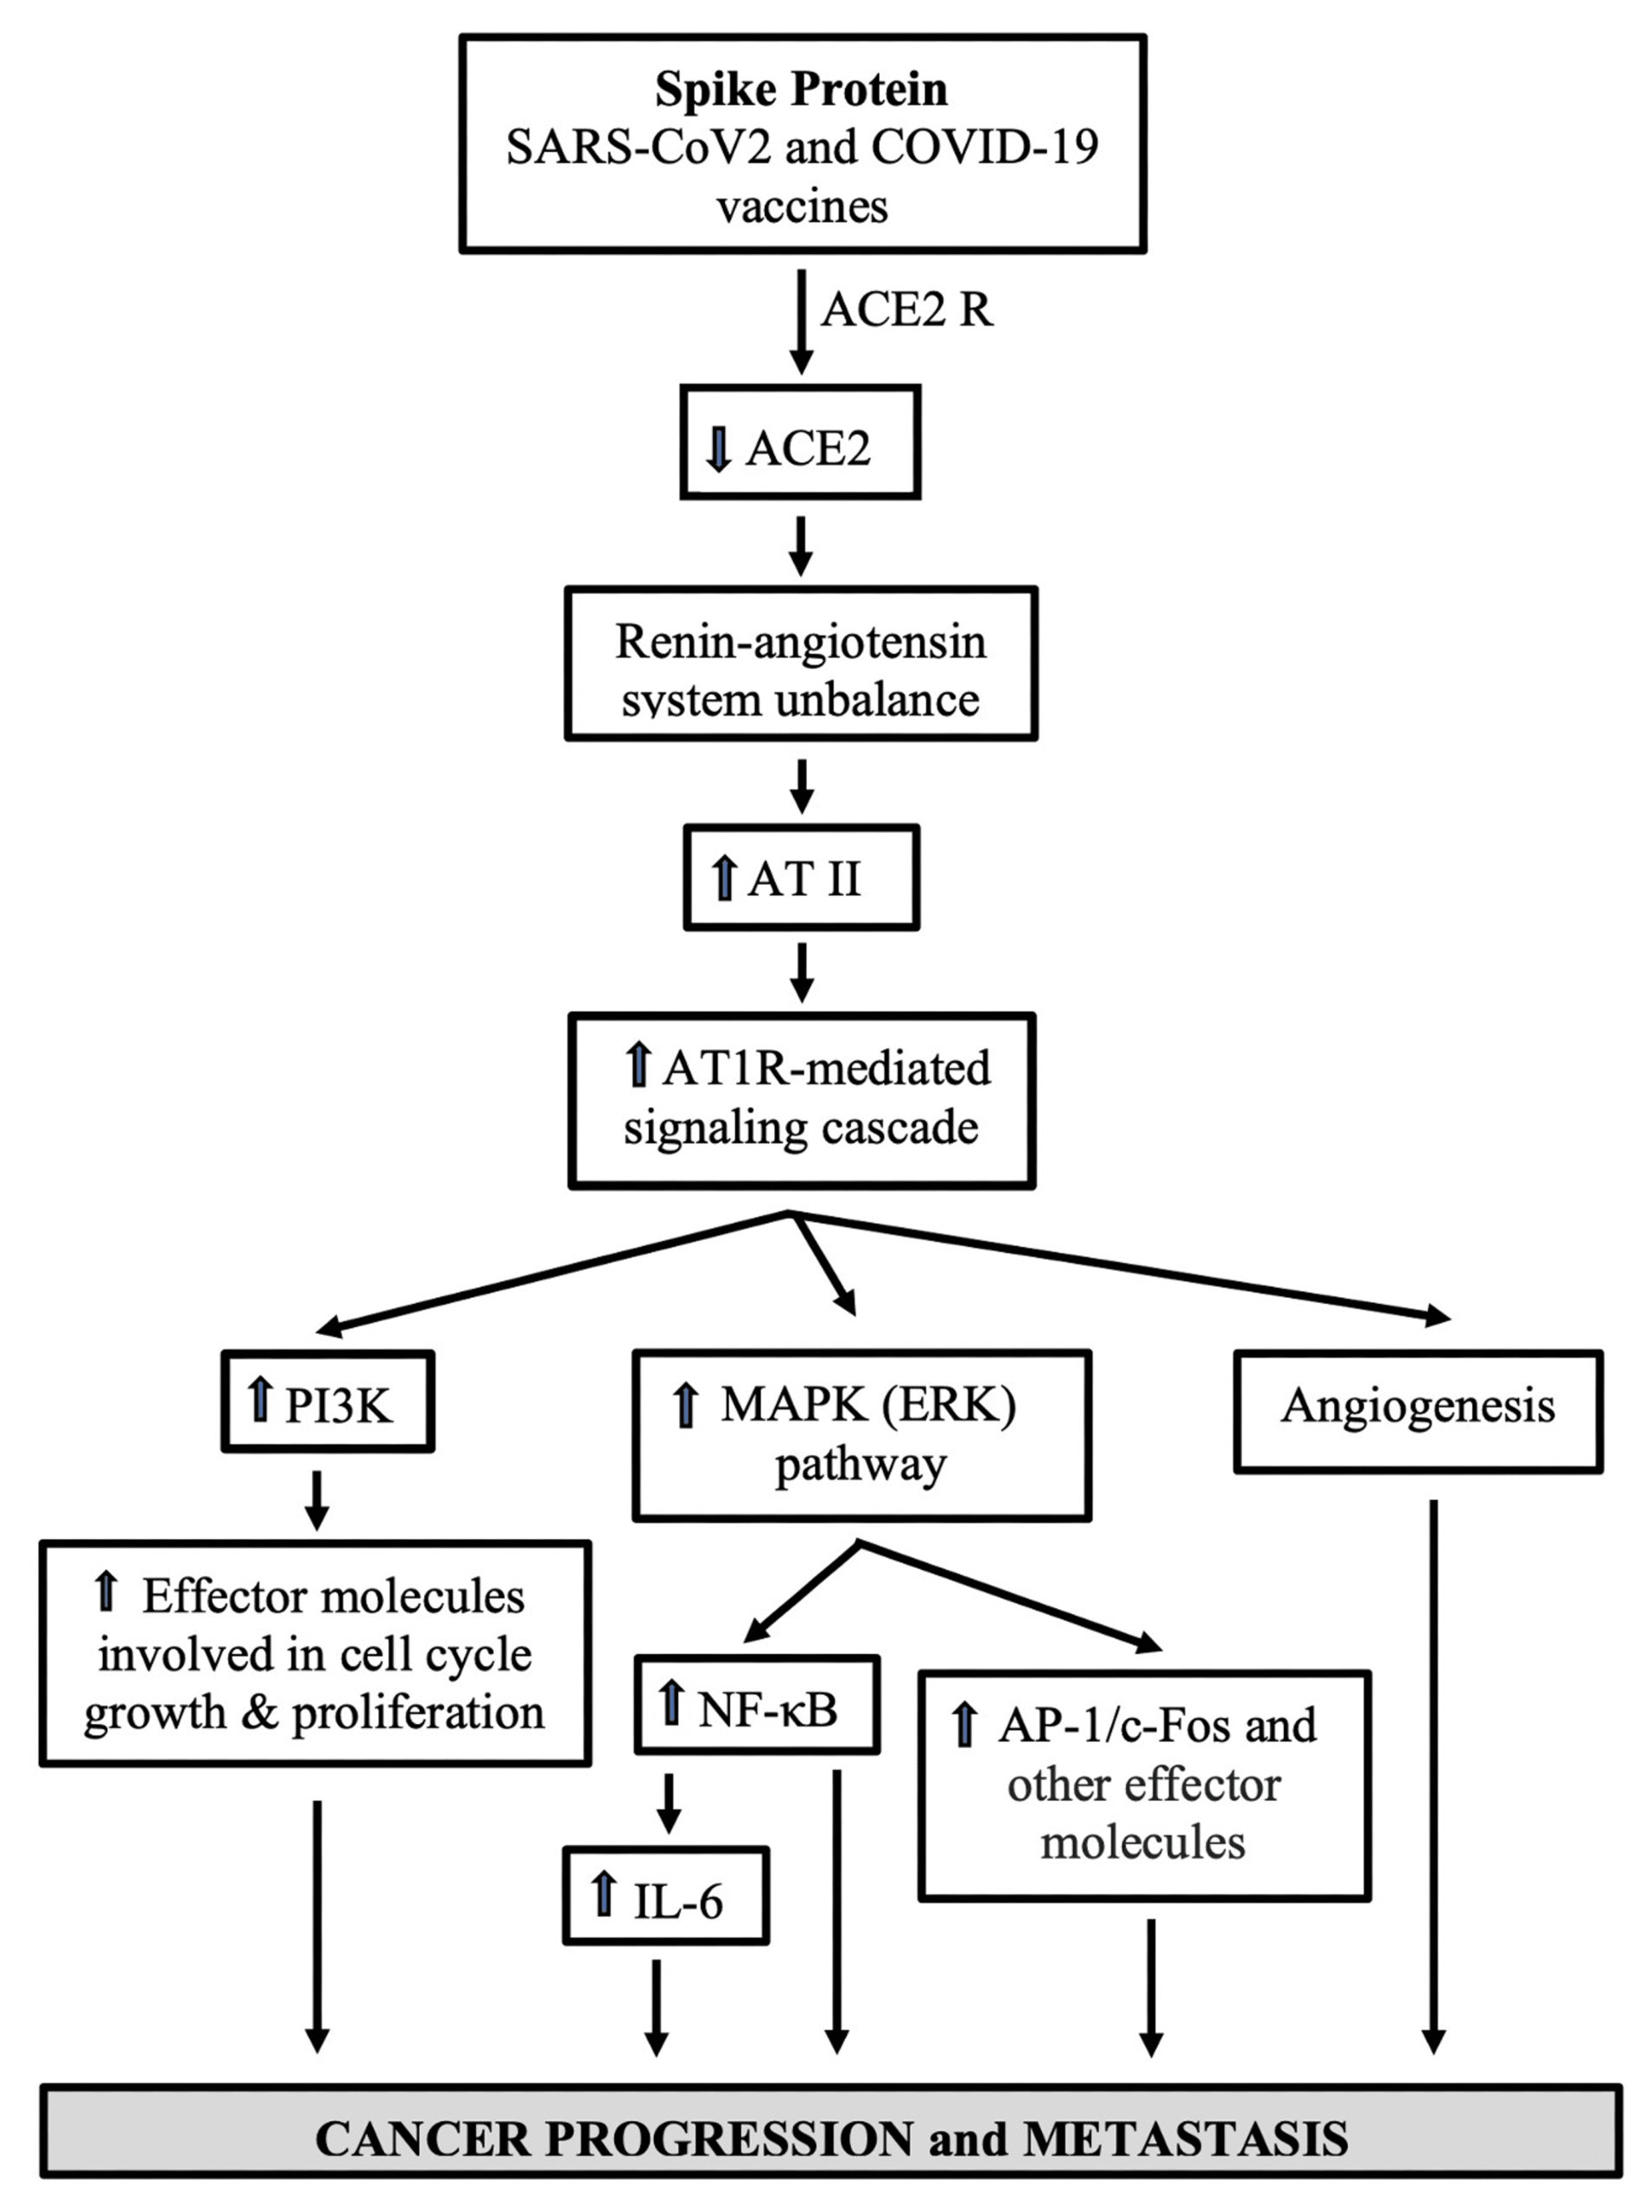
El SARS-CoV-2 contiene una proteína de pico que consta de dos subunidades: S1 y S2. S1 ayuda al virus a infectar células humanas al unirse a ACE2, una proteína multifuncional expresada principalmente en la superficie de muchas células [ 60 , 61 ]. S2 media el proceso de fusión de membranas [ 62 ]. Además de facilitar la entrada del SARS-CoV-2 en las células huésped, la interacción entre la proteína de pico y AEC2 provoca la señalización celular en aquellas células que expresan ACE2 [ 63 ]. Los datos muestran que, en las células vasculares pulmonares y en las células implicadas en el desarrollo de la hipertensión arterial pulmonar, la subunidad S1 de la proteína de pico por sí sola activó MEK, el modulador de la quinasa regulada por señales extracelulares (ERK) [ 63 ], que es un mecanismo de transducción de señales para el crecimiento celular [ 64 ]. Además, Patra et al. [ 65 ] transmitieron que la espiga de longitud completa, a través de la regulación negativa de la expresión de ACE2, promovió una cascada de señalización mediada por el receptor de tipo I de angiotensina II (AT1R), indujo las moléculas reguladoras de la transcripción factor nuclear-κB (NF-κB) y proteína activadora 1 (AP-1)/c-Fos a través de la activación de la proteína quinasa activada por mitógeno (MAPK), y aumentó los niveles de interleucina 6 (IL-6) en las células epiteliales (Figura 2 ) [ 65 ].
Figura 2. La regulación negativa de ACE2 mediada por picos y la señalización celular podrían promover la progresión del cáncer en pacientes con COVID-19 y vacunados.
La regulación negativa de ACE2 y su posterior respuesta mediada por AT1R tienen el potencial de estimular la progresión del cáncer y la metástasis a través de sus actividades promotoras del crecimiento y proangiogénicas.
SARS-CoV-2: coronavirus 2 del síndrome respiratorio agudo severo, COVID-19: coronavirus 2019, ACE2 R: enzima convertidora de angiotensina 2 que actúa como receptor de entrada para el SARS-CoV-2, ACE2: enzima convertidora de angiotensina 2, AT II: angiotensina II, AT1R: receptor de angiotensina II tipo 1, PI3K: fosfatidilinositol 3-quinasa, MAPK: proteína quinasa activada por mitógenos, ERK: quinasa regulada por señales extracelulares, NF-κB: factor nuclear-κB, IL-6: interleucina 6, AP-1: proteína activadora 1
La activación de NF-κB en células cancerosas promueve la proliferación, la quimiorresistencia y la invasión, mientras que en el microambiente tumoral estimula la angiogénesis y la supresión inmunitaria, apoyando colectivamente el proceso metastásico [ 66 ]. La cascada de señalización Ras/Raf/MEK/ERK (MAPK) está frecuentemente involucrada en la malignidad [ 67 ]. De hecho, más del 30% de todos los cánceres humanos son impulsados por genes Ras [ 68 – 75 ]. Los niveles elevados de IL-6 se correlacionan con mayores tasas de recaída tumoral en cáncer de mama y cáncer de cabeza y cuello [ 76 , 77 ]. Por el contrario, la inhibición de la señalización IL-6/transductor de señal y activador de la transcripción 3 (STAT3) redujo la recurrencia del cáncer en modelos preclínicos de carcinoma de mama, cabeza y cuello, y hepatocelular [ 78 – 80 ]. La cascada de señalización mediada por AT1R también activa la fosfatidilinositol 3-quinasa (PI3K), un componente de una de las vías intracelulares más importantes (PI3K/AKT/mTOR) y un regulador clave del cáncer [ 67 , 81 ]. La sobreactivación de esta vía está presente en muchas neoplasias malignas humanas y se ha relacionado con la progresión del cáncer. De forma consistente, el uso de inhibidores de PIK3 es un enfoque común en el tratamiento de tumores [ 82 ].
Considerando que las células humanas responden sensiblemente a la espiga y/o su subunidad S1 para provocar la señalización celular de la ECA2 y que la ECA2 ejerce múltiples efectos antitumorales y antiinvasivos, incluida la inhibición de la angiogénesis y la metástasis del cáncer, la regulación negativa (o pérdida) prolongada (o incluso transitoria) de la ECA2 mediada por la espiga podría per se promover la progresión tumoral [ 83-86 ] . Sorprendentemente, se ha descubierto que la espiga flotante, las subunidades S y los fragmentos de péptidos S entran en la circulación y persisten en el cuerpo durante semanas [ 87 , 88 ] e incluso meses [ 89 ] después de la vacunación contra la COVID-19 en concentraciones comparables a las encontradas en pacientes graves con COVID-19 (Tabla 1 ) [ 89 , 90 ].
Tabla 1. Concentración y persistencia en el cuerpo de los antígenos de pico después de la vacunación mediada por ARNm.
*: [ 87 ], **: [ 88 ], ***: [ 89 ]
BNT162b: vacuna de Pfizer/BioNTech, ARNm-1273: vacuna de Moderna
Antígeno | Vacunación | Concentración (pg/mL) | Tiempo en el cuerpo (días) |
S * | ARNm-1273 de BNT162b | Días 1-2 después de la primera dosis: niveles medios de S: 47 pg/mL (plasma) | Presente al menos 1-2 días (plasma) y 60 días (centros germinales y ganglios linfáticos) después de la segunda dosis |
Día 7 después de la primera dosis: niveles medios de S: 1,7 pg/mL (plasma) | |||
Días 1-2 después de la segunda dosis: niveles medios de S: 1,2 pg/mL (plasma) | |||
S, S1 ** | ARNm-1273 | Niveles pico medios de S: 62 ± 13 pg/mL (plasma) | S presente hasta 15 días después de la primera dosis, indetectable después de la segunda dosis (plasma) |
Niveles pico medios de S1: 68 ± 21 pg/mL (plasma) | S1 presente hasta 14 días después de la primera dosis, indetectable después de la segunda dosis, niveles máximos a los 5 días (plasma) | ||
Fragmentos S *** | ARNm-1273 de BNT162b | – | 69-187 días después de la vacunación (plasma) |
Por lo tanto, es imperativo monitorear las consecuencias a mediano y largo plazo de las vacunas contra la COVID-19 que introducen la proteína espiga en el cuerpo humano. Es fundamental desarrollar modelos animales experimentales adecuados para comprender la contribución y las implicaciones funcionales de estas cascadas de señalización en relación con la progresión del cáncer, la recurrencia y/o la sensibilidad a las terapias oncológicas.
Las vacunas de ARNm están diseñadas para desactivar la inmunidad innata del huésped a través de los receptores tipo Toll (TLR), lo que compromete las respuestas de IFN tipo I.
El ADN y el ARN estimulan el sistema inmunitario innato de los mamíferos a través de la activación de los TLR, una clase de proteínas expresadas principalmente en células centinela (es decir, células dendríticas y macrófagos) que constituyen la primera línea de defensa contra patógenos invasores y moléculas endógenas liberadas por células moribundas o dañadas [ 91 ]. Los TLR desencadenan múltiples vías de señalización que involucran a NF-κB, factores reguladores de IFN (IRF) y MAPK para la producción de varias citocinas que desempeñan papeles importantes en muchas enfermedades, incluido el cáncer. El ARN particularmente señala a través de TLR3, TLR7 y TLR8 endosómicos humanos; sin embargo, la incorporación de nucleósidos modificados en la molécula de ARN elimina la actividad de TLR [ 92 , 93 ]. Las vacunas de ARNm de la COVID-19 tienen todas las uridinas en la secuencia de ARNm de la espiga del SARS-CoV-2 reemplazadas sintéticamente por N1-metil-pseudouridina (m1Ψ) [ 94 , 95 ]. Este reemplazo aumenta la estabilidad biológica, promueve la traducción del ARNm e inhibe drásticamente la detección inmunitaria innata, ya que la activación inmunitaria no controlada puede conducir a reacciones alérgicas indeseables y shock anafiláctico [ 94 , 96 ].
A pesar de la contribución crítica de las pseudouridinas a las vacunas de ARNm contra la COVID-19, se sabe poco sobre las consecuencias biológicas de administrar ARNm modificado m1Ψ altamente estabilizado dentro del citoplasma de las células humanas. Por ejemplo, los estudios muestran que la vacunación con BNT162b2 (el primer candidato de Pfizer/BioNTech en recibir la Autorización de Uso de Emergencia de la FDA) disminuyó significativamente la producción de IFN-α (IFN tipo I) e IFN-γ (IFN tipo II) después de la estimulación con el agonista de TLR7/8 R848 y el agonista de TL3 poli I:C [ 97 ]. Según Föhse et al. [ 97 ], la disminución de la sensibilidad de los TLR endosomales que interactúan con el ARNm modificado transfectado podría posteriormente ablacionar la actividad de TLR3/7/8 y disminuir la producción de citocinas. Es importante destacar que una respuesta inmune efectiva implica la inducción de una cascada robusta de señalización de IFN tipo I mediada por TLR como parte del sistema inmune innato. Si se suprime esta respuesta, puede producirse inmunopatología durante infecciones virales líticas y latentes [ 98 , 99 ]. Se han descrito defectos en la expresión de TLR en personas con infecciones por herpesvirus [ 100 , 101 ]. Las mutaciones en TLR3 y sus moléculas de señalización descendentes se han asociado con casos de encefalitis por virus del herpes simple [ 102 , 103 ], meningoencefalitis por virus de la varicela zóster [ 102 ] y herpes zóster oftálmico recurrente [ 103 ]. Cabe destacar que se ha descrito un número cada vez mayor de casos de herpes zóster después de la vacunación con ARNm (BNT162b2 y ARNm -1273), pero no con adenovirus vectorizado o inactivado contra la COVID-19 [104-109 ] . Dicha observación es coherente con una respuesta de IFN tipo I mediada por TLR alterada desencadenada por el ARNm modificado con m1Ψ.
El perfil multimodal de células individuales de sangre periférica de pacientes con COVID-19 aguda y voluntarios sanos antes y después de recibir la inyección de BNT162b2 también reveló diferencias dramáticas en respuesta a ambos desafíos inmunes. En pacientes con COVID-19, las respuestas inmunes se caracterizaron por una respuesta de IFN tipo I altamente aumentada, que estuvo en gran medida ausente en los receptores de la vacuna. El aumento de la señalización de IFN probablemente contribuyó a la drástica regulación positiva de genes citotóxicos en las células T periféricas y los linfocitos similares a innatos observados en pacientes con COVID-19. El análisis de los repertorios de células B y T reveló que, si bien la mayoría de los linfocitos clonales en pacientes con COVID-19 eran células efectoras, en los receptores de la vacuna, la expansión clonal se restringió principalmente a las células de memoria circulantes [ 110 ]. A pesar de esto, no hay un amplio consenso sobre si la actividad de IFN tipo I es robusta [ 23 , 110 , 111 ] o comprometida [ 112 , 113 ] durante la infección por SARS-CoV-2. Por ejemplo, la evidencia contraria muestra que la subunidad S1 del SARS-CoV-2 suprimió directamente la expresión de ACE2 y los IFN tipo I en células primarias del lavado broncoalveolar del pulmón de macaco [ 113 ], contribuyendo así a la enfermedad pulmonar asociada al SARS-CoV-2. Además, el diagnóstico de COVID-19 en personas ≥50 años se ha asociado con un mayor riesgo de desarrollar herpes zóster [ 114 , 115 ]. Esta aparente controversia podría explicarse parcialmente por el ajuste fino entre las respuestas inmunitarias antivirales agudas que logran rápidamente la eliminación de la infección a través de una alta secreción de IFN y las que conducen a patrones inflamatorios más largos y robustos (es decir, formas graves de COVID-19) con agotamiento funcional de las respuestas de IFN [ 116 ]. No obstante, la linfopenia periférica (descrita tanto en pacientes con COVID-19 grave como en vacunados contra la COVID-19) podría justificar alternativamente (o adicionalmente) la reactivación de infecciones latentes por herpes zóster tanto en pacientes con COVID-19 como en personas que recibieron las vacunas de ARNm contra la COVID-19.
Notablemente, los TLR se expresan no solo en células inmunes sino también en células tumorales, donde pueden inhibir y promover la malignidad [ 117 ]. Estudios copiosos en humanos y ratones subrayan la importancia del IFN tipo I endógeno, producido por células inmunes y tumorales, en el control del crecimiento tumoral y en la respuesta a terapias antitumorales [ 118 – 120 ]. Seneff et al. [ 23 ] discuten extensamente la complejidad y el papel de los IFN tipo I, particularmente IFN-α, en la vigilancia del cáncer y la supresión del cáncer. Los autores señalan la gama deslumbrante de efectos anticancerígenos iniciados por IFN-α a través de mecanismos tanto directos (es decir, detención del ciclo celular, apoptosis y activación de células asesinas naturales y células T CD8+) como indirectos (es decir, activación de la transcripción génica de la vía Janus quinasa/transductor de señales y activador de la transcripción (JAK/STAT)) [ 23 ]. La vía JAK/STAT está desregulada en varias neoplasias hematológicas, y se ha demostrado que esto aumenta el potencial metastásico en modelos animales de melanoma, cáncer colorrectal y linfoma [ 121 ]. Los defectos en la señalización de IFN de linfocitos surgen en pacientes con cáncer de mama, melanoma y cáncer gastrointestinal, y estos defectos pueden representar un mecanismo común asociado al cáncer de disfunción inmunitaria [ 120 ]. Consistentemente, la administración exógena de IFN tipo I y/o el uso de inductores de IFN tipo I potencian las respuestas inmunitarias innatas y adaptativas contra tumores sólidos [ 122 , 123 ].
El deterioro de las respuestas de IFN tipo I también se observa en otras enfermedades, incluidas las infecciones crónicas (es decir, VIH/SIDA) y las condiciones autoinmunes (es decir, esclerosis múltiple (EM)). Al interferir con las respuestas de IFN tipo I, el VIH-1 puede eludir la señalización antiviral del huésped y establecer reservorios virales persistentes. Los defectos mediados por el VIH-1 en la vía de IFN incluyen el deterioro de los receptores de proteínas involucrados en la detección de patógenos, cascadas de señalización descendentes requeridas para la regulación positiva de IFN tipo I y la expresión o función de proteínas antivirales clave inducibles por IFN tipo I [ 124 , 125 ]. Notablemente, las personas infectadas con VIH tienen un riesgo sustancialmente mayor de algunos tipos de cáncer en comparación con la población general, incluido el sarcoma de Kaposi, el linfoma no Hodgkin, el cáncer de cuello uterino [ 50 ] y, en menor medida, cánceres de ano, hígado, cavidad oral/faringe y pulmón y linfoma de Hodgkin [ 51 ]. De manera similar, los pacientes con EM que tienen una señalización de IFN tipo I suprimida y responden bien a la terapia con IFN [ 126 , 127 ] también tienen un mayor riesgo de desarrollar cáncer que la población general [ 128 ]. Este mayor riesgo es particularmente evidente para los cánceres de próstata, mama, colorrectal y anal, así como para los cánceres de tráquea, bronquios y pulmón.
En general, las funciones extremadamente complicadas y pleiotrópicas de las respuestas de TLR y de IFN tipo I en la biología tumoral instan a tener precaución al introducir ARNm sintéticos (es decir, m1Ψs) para aplicaciones terapéuticas in vivo. Lo que es más importante, las respuestas de IFN tipo I mediadas por TLR interrumpidas después de la infección por SARS-CoV-2 y la vacunación con ARNm pueden no ser comparables por las siguientes razones. En primer lugar, el ARNm sintético modificado con m1Ψ, a diferencia del ARN viral, tiene la capacidad de suprimir la actividad de TLR. En segundo lugar, estudios recientes sugieren que la producción endógena de la proteína espiga sintética persiste durante mucho tiempo (>6 meses) dentro del cuerpo humano [ 87-89 ]. En tercer lugar, mientras que la mayor parte de la proteína espiga viral probablemente permanece en el tracto respiratorio, la producción de espiga inducida por la vacuna tiene lugar en órganos y tejidos internos, por lo que está en posición de ejercer efectos más sistémicos [ 129 ]. De hecho, los estudios de biodistribución de la vacuna BNT162b2 en modelos animales revelaron que la vacuna no permanece en el sitio de la inyección sino que se acumula en diferentes órganos (es decir, hígado, bazo, pulmones, ovarios, etc.) 48 horas después de la inoculación [ 130-133 ]. En este contexto, Bansal et al. [ 134 ] demostraron un papel importante de los exosomas circulantes que expresan la glicoproteína de la espiga en la superficie para una inmunización eficaz después de la vacunación basada en ARNm. Estos exosomas fueron detectables el día 14 después de la primera inyección, aumentaron después de la dosis de refuerzo y disminuyeron considerablemente después de cuatro meses. Por lo tanto, es plausible que los exosomas contribuyan a la dispersión de la espiga (y su secuencia de ARNm) por todo el cuerpo, viajando a través del sistema linfático, el sistema vascular e incluso a lo largo de las fibras nerviosas. Finalmente, el cumplimiento de los programas de vacunación de dosis múltiples a intervalos relativamente cortos [ 8 ] puede posiblemente aumentar el riesgo de efectos adversos en los receptores de la vacuna. Se necesitan más estudios para arrojar luz sobre las vías pro- y antitumorales dependientes de TLR que pueden desregularse como resultado de la vacunación con ARNm y/o la infección por SARS-CoV-2.
La optimización de codones de las vacunas contra la COVID-19 puede provocar la desregulación del sistema de unión de la proteína ARN-G cuádruplex (G4), alterando la regulación de la traducción de los microARN celulares.
El diseño de las vacunas contra la COVID-19 implica diferentes tipos de optimizaciones, incluida la optimización de codones [ 135 ]. La optimización de codones es un enfoque de ingeniería genética que utiliza cambios de codones sinónimos para aumentar la producción de proteínas en huéspedes que no expresan el gen de forma natural. Este proceso generalmente aumenta el contenido de GC, lo que se correlaciona con un mayor nivel de transcripción, posiblemente como resultado de una disminución de la pausa transcripcional [ 136 ]. Algunos autores advierten que la optimización de codones compromete la seguridad y la eficacia de las terapias biotecnológicas [ 137 ]. McKernan et al. [ 138 ], Seneff et al. [ 23 ] y otros describen que el enriquecimiento significativo del contenido de GC en las vacunas de ARNm contra la COVID-19 (en comparación con el ARNm de la espiga nativa del SARS-CoV-2) podría conducir a un aumento de estructuras secundarias como los motivos G4 durante la traducción. Específicamente, McKernan et al. [ 138 ] presentan una serie de enfoques in silico, como RNAfold y QGRSMapper, que muestran cambios en la estructura secundaria de los ARN derivados de la vacuna en comparación con el virus nativo. Cabe destacar el mayor número de formaciones G4 en las vacunas de ARNm con codones optimizados (es decir, 19 y nueve motivos G4 en los ARNm de Moderna y Pfizer/BioNTech, respectivamente, frente a cuatro motivos G4 en la región codificante de la espícula del virus SARS-CoV-2). La abundancia de estructuras G4 en el ARNm vacunal probablemente amplifica la unión de proteínas de unión al ARN y microARN que normalmente se dirigen a los G4 expresados en humanos para la regulación normal de la expresión génica humana. Además, el uso de m1Ψ en los ARNm vacunales oscurece aún más las predicciones de plegamiento ya que el apareamiento de bases promiscuo de m1Ψ facilita errores de traducción [ 135, 139-141] y estabiliza los G4 [142, 143 ] , exacerbando así el impacto de la formación de G4 con la optimización de codones [ 138 ].
La desregulación del sistema de unión de la proteína G4 del ARN podría disminuir drásticamente la expresión celular de microARN, que está involucrada en muchas condiciones patológicas como la enfermedad cardiovascular, el inicio de la neurodegeneración y la progresión del cáncer [ 23 ]. Un ejemplo, vital para el mantenimiento normal celular, es el del homólogo del doble minuto 2 de ratón (MDM2), que es una proteína reguladora negativa física de p53 (p53 es una proteína supresora de tumores bien conocida que se describe a continuación). La desregulación de los microARN que controlan la interacción intrincada entre MDM2 y p53 conduce previsiblemente a un mayor riesgo de una variedad de cánceres [ 23 , 138 , 144 – 146 ]. Otro ejemplo es la amplificación de las repeticiones de ARN G4 en la esclerosis lateral amiotrófica/demencia frontotemporal (ELA/DFT) ( gen C90RF72 ) y el síndrome del cromosoma X frágil ( gen FMR1 ) [ 147 ]. En estas enfermedades, también se informan cambios en los niveles de expresión o mutaciones en las proteínas de unión al ARN G4, lo que sugiere que estas proteínas no pueden ejercer su función crítica para la fisiología neuronal normal cuando están mutadas o en células con expansiones del ARN G4 [ 147 ].
En gran medida, estas observaciones resaltan la complejidad evolucionada del uso de codones y desafían las bases científicas para la optimización de codones en la terapéutica humana.
Las LNP utilizadas en las vacunas de ARNm son altamente inflamatorias en ratones.
Las LNP son un componente vital de las vacunas contra la COVID-19 basadas en ARNm y desempeñan un papel clave en la mejora de la estabilidad in vivo del ARNm y la mejora de la administración al citosol de las células presentadoras de antígenos [ 148 ]. Las LNP constan de cuatro componentes principales: un fosfolípido neutro, colesterol, un lípido de polietilenglicol y un lípido catiónico ionizable [ 149 ].
Las propiedades altamente inflamatorias de las LNP catiónicas se conocen desde 2010 [ 150 ]. Un informe reciente [ 150 ] mostró específicamente que las LNP utilizadas en estudios preclínicos de vacunas de ARNm modificadas con nucleósidos contra la COVID-19 son altamente inflamatorias en ratones. La inyección intradérmica de estas LNP provocó una infiltración masiva de neutrófilos, una activación rápida y robusta de diversas vías inflamatorias y la producción de varias citocinas y quimiocinas inflamatorias. La administración intranasal provocó respuestas inflamatorias similares en el pulmón [ 151 ]. Si bien la actividad adyuvante intrínseca de las LNP puede contribuir a generar inmunidad protectora, la activación incontrolada de varias vías inflamatorias distintas y convergentes y la secreción de citocinas y quimiocinas inflamatorias podrían provocar inflamación y citotoxicidad graves. Por lo tanto, se necesitan estudios exhaustivos para mapear las interacciones entre los LNP catiónicos y los receptores de reconocimiento de patrones intracelulares para desentrañar los mecanismos integrados y multifacéticos por los cuales estos lípidos inducen la activación del inflamasoma [ 152 ]. Además, si bien es probable que la inyección intramuscular de los complejos LNP-ARNm de la vacuna COVID-19 desencadene respuestas similares en humanos [ 151 ], la naturaleza exacta de dichas respuestas y en qué medida se superponen con las firmas inflamatorias documentadas en ratones siguen siendo desconocidas. De manera relevante, las inyecciones vectorizadas de adenovirus, a diferencia de las vacunas de ARNm, no inducen respuestas inmunes innatas graves (es decir, tormenta de citocinas), hiperinflamación o daño importante en las células diana [ 153 ]. Por el contrario, la COVID-19 grave (que afecta a aproximadamente el 5% de la población infectada con SARS-CoV-2) [ 154 ] desencadena una tormenta de citocinas en los tejidos pulmonares que puede ir acompañada de inmunopatología, viremia y colapso multiorgánico sistémico [ 155 – 157 ].
En el contexto del cáncer, la inflamación predispone el desarrollo de la enfermedad y promueve todas las etapas de la tumorigénesis [ 158 ]. La inflamación extrínseca al tumor es causada por muchos factores, incluyendo infecciones bacterianas y virales, enfermedades autoinmunes, obesidad, tabaquismo, exposición al asbesto y consumo excesivo de alcohol [ 158 ]. Alrededor del 15% – 20% de todos los casos de cáncer son precedidos por infección, inflamación crónica o autoinmunidad en el mismo tejido u órgano [ 158 – 164 ]. En tales casos, la inflamación promotora del cáncer es inducida y existe mucho antes de la formación del tumor. Por el contrario, la inflamación intrínseca al cáncer o provocada por el cáncer puede ser desencadenada por mutaciones iniciadoras del cáncer, contribuyendo a la progresión maligna a través del reclutamiento y activación de células inflamatorias [ 158 ]. Tanto la inflamación extrínseca como la intrínseca pueden resultar en inmunosupresión, proporcionando así un fondo preferido para el desarrollo del tumor. Cabe destacar que los neutrófilos participan activamente en una red de reacciones inflamatorias que promueven todas las etapas de la iniciación, progresión, angiogénesis y metástasis tumoral [ 165-170 ] . Los neutrófilos forman trampas extracelulares de neutrófilos (NET) que, cuando se desregulan, conducen a la exacerbación de la inflamación [ 171 , 172 ], progresión del cáncer sin restricciones, reactivación de DCC y diseminación metastásica, tanto en modelos animales como en pacientes con cáncer [ 173 ] . Además, el microambiente tumoral, que está en gran medida orquestado por células inflamatorias, fomenta la proliferación, supervivencia y migración de células neoplásicas. Notablemente, las respuestas inflamatorias se agravan en un fondo de condiciones inflamatorias preexistentes, como se demostró recientemente en un modelo de ratón después de la administración de ARNm-LNP [ 174 ]. Se demostró que este efecto es específico de los LNP, actuando independientemente de la carga de ARNm. Dado que las LNP suelen acumularse en tumores debido a la mejora de la permeabilidad y el efecto de retención (EPR) [ 175-178 ] , es fundamental proteger a las células cancerosas de los estímulos de estrés relacionados con la transformación, como la inflamación y la acción protumorigénica de las NET. Por lo tanto, comprender las interacciones entre las LNP y los neutrófilos [ 179 ] es crucial para el desarrollo de nanomateriales seguros y eficaces.
La posible transcripción inversa y la integración genómica de ARN extraño son una fuente de inestabilidad genómica.
Un nuevo estudio de Acevedo-Whitehouse y Bruno [ 180 ] analiza la posibilidad de que partes del genoma del SARS-CoV-2 puedan experimentar transcripción inversa e integración genómica dentro de las células infectadas, lo que lleva a la transcripción persistente de las secuencias integradas. Esta hipótesis se basa en un estudio in vitro que detectó la presencia de copias de secuencias de SARS-CoV-2 con transcripción inversa en células humanas transfectadas y encontró transcripción activa de los segmentos subgenómicos integrados [ 181 ]. Acevedo-Whitehouse y Bruno especulan que el mismo fenómeno podría ocurrir en células humanas que recibieron vacunas de ARNm contra la COVID-19. De hecho, un estudio reciente de Aldén et al. [ 182 ] informó que un retrotransposón endógeno, concretamente, el elemento nuclear intercalado largo 1 (LINE-1), se desactivó tras la entrada del ARNm de BNT162b2 en la célula. Esto llevó a la transcripción inversa de secuencias de ARNm de la vacuna de longitud completa y a la posterior entrada nuclear.
Si estos resultados se confirman in vivo, la actividad sostenida de LINE-1 no silenciado, que normalmente se reprime en las células somáticas, podría aumentar el riesgo de mutagénesis insercional de las moléculas transcritas inversamente, lo que, a su vez, podría alterar las regiones codificantes, aumentar el riesgo de mutaciones en genes supresores de tumores y conducir a un daño sostenido del ADN en células y tejidos a los que se dirige la vacuna [ 180 ]. La retrotransposición de LINE-1 es de hecho un sello distintivo del cáncer [ 183 ] y se correlaciona con mutaciones de p53, alteraciones del número de copias y puntos de control de la fase S del ciclo celular [ 184 ]. Es importante destacar que la activación de LINE-1 aumenta el riesgo de transición epitelial-mesenquimal y metástasis en el cáncer epitelial, que representa el 80%-90% de todos los cánceres humanos conocidos [ 185 ]. Por lo tanto, existe una necesidad urgente de claridad sobre la posible activación de LINE-1 inducida por la COVID-19 y la vacuna contra la COVID-19 y sus repercusiones en células cancerosas y/o precancerosas con altos niveles intrínsecos de expresión de LINE-1.
Además, si las secuencias de la vacuna de ARNm de la espícula del SARS-CoV-2 se transcriben de forma inversa, se integran en el genoma de las células diana y se expresan como transcripciones quiméricas que combinan secuencias virales y celulares, la desregulación del sistema de unión de la proteína G4 del ARN podría promover aún más la malignidad. De hecho, estudios experimentales y predicciones bioinformáticas respaldan la opinión de que las G4 participan en diferentes funciones celulares asociadas tanto con los procesos del ADN (es decir, elongación de los telómeros, recombinación y transcripción) como con los mecanismos postranscripcionales del ARN (es decir, procesamiento del pre-ARNm, recambio del ARNm, orientación y traducción) [ 186 ]. Como se señaló anteriormente, un número cada vez mayor de enfermedades diferentes (es decir, transformación neoplásica y neurodegeneración) se han asociado con la regulación inapropiada de las G4 del ARN, lo que ejemplifica la importancia potencial de estas estructuras en la salud humana. En particular, la formación de la estructura G4, si no se regula de manera eficiente, puede estimular la inestabilidad del genoma, induciendo mutaciones, deleciones y reordenamientos cromosómicos macroscópicos complejos [ 187 ]. Un estudio computacional que comparó la ubicación de los posibles sitios de formación de G4 con los puntos de ruptura asociados al cáncer reveló una superposición significativa, particularmente en aquellos cánceres que albergan mutaciones en TP53 (el gen que codifica p53). Esto se ve subrayado por estudios computacionales en células de melanoma que vincularon las regiones G4 con puntos críticos mutacionales [ 188 ]. Además, Hänsel-Hertsch et al. [ 189 ] identificaron una correlación directa de las G4 con cambios mutacionales en diferentes entidades de cáncer de mama. Esto respalda la idea de que la formación de G4 estimula e influye en las tasas de mutación en diferentes tipos de cáncer.
La subunidad S2 de la glicoproteína de pico del SARS-CoV-2 interactúa con las proteínas supresoras de tumores p53 y cáncer de mama 1/2 (BRCA1/2) in silico
Utilizando análisis bioinformáticos (in silico), Singh y Bharara [ 190 ] demostraron que la subunidad S2 del SARS-CoV-2 interactúa fuertemente con las conocidas proteínas supresoras de tumores p53 y BRCA1/2, que frecuentemente mutan en cánceres humanos. Estas proteínas proporcionan una barrera importante a la transformación neoplásica y progresión tumoral por su capacidad única de actuar como colectores extremadamente sensibles de entradas de estrés y de coordinar un marco complejo de diversas vías y procesos efectores que protegen la homeostasis celular y la integridad del genoma. p53 y BRCA1/2 actúan predominantemente en el núcleo celular regulando la progresión del ciclo celular, la reparación y recombinación del daño del ADN y la transcripción génica [ 191-193 ] . Sin embargo, estas proteínas también desempeñan papeles críticos en el citoplasma, desencadenando la apoptosis e inhibiendo la autofagia, contribuyendo así a su misión como supresores tumorales [ 194 , 195 ] . Se ha informado que el p53 de tipo salvaje está secuestrado anormalmente en el citoplasma de un subconjunto de tumores humanos primarios [ 196 ]. Una gran cantidad de mutaciones asociadas con el cáncer que alteran la orientación nuclear de BRCA1 restringen la proteína al citosol y disminuyen su función nuclear en la reparación de roturas de ADN por recombinación homóloga [ 197 ]. En particular, la acumulación citosólica de BRCA1 promueve la metástasis del cáncer de mama [ 198 ] y predice de forma independiente la supervivencia, el grado del tumor y la recurrencia en cánceres de mama esporádicos de tipo basal de bajo grado [ 199 ].
Si, como in silico, la subunidad S2 de la proteína espiga interactúa con proteínas supresoras de tumores in vivo, tal demostración tendría implicaciones no solo para la salud a largo plazo de los afectados por la COVID-19, sino también para quienes recibieron la vacuna contra la COVID-19 y dosis de refuerzo repetidas. De hecho, tanto las vacunas de ARNm como las vacunas vectorizadas con adenovirus llevan el material genético que instruye a las células huésped para que expresen la proteína espiga. Como se describió anteriormente, los estudios de biodistribución de la vacuna BNT162b2 revelaron su acumulación en diferentes órganos 48 horas después de la inoculación [ 130-134 ] . Lo más importante es que las LNP, que son un componente vital de las vacunas de ARNm, se acumulan preferentemente en el tejido tumoral sobre el tejido sano debido al efecto EPR [ 175-178 ]. Con base en estos hallazgos, es esencial descifrar el alcance, el papel detallado y las consecuencias biológicas de las interacciones potenciales entre S2 y las proteínas supresoras de tumores (es decir, p53 y BRCA1/2) en pacientes con COVID-19 y vacunados, particularmente si estas interacciones confieren una ventaja selectiva (es decir, promoción de la supervivencia de las células cancerosas, invasión, metástasis y quimiorresistencia) a las células cancerosas y/o precancerosas.
Los cánceres asociados con mutaciones de TP53 incluyen cáncer de mama, sarcomas de huesos y tejidos blandos, tumores cerebrales y carcinomas adrenocorticales. Otros cánceres menos frecuentes incluyen leucemia, cáncer de estómago y cáncer colorrectal [ 200 ]. Los cánceres asociados con actividad reducida de BRCA1 incluyen cáncer de mama, útero y ovario en mujeres, cáncer de próstata y mama en hombres, y un modesto aumento en el cáncer de páncreas tanto en hombres como en mujeres [ 201 , 202 ]. Los cánceres con mutaciones de BRCA2 más comúnmente reportados incluyen páncreas, próstata en hombres y melanoma [ 203 ].
La desregulación o los cambios aberrantes en los niveles/actividad de p53 [ 204 , 205 ], así como el secuestro citoplasmático de BRCA1 [ 206 ], también se han vinculado a la disfunción neuronal. Por lo tanto, la posible interacción in vivo entre S2 y las proteínas supresoras de tumores podría tener consecuencias no solo para las células cancerosas de ciclo rápido, sino también para las células que no lo tienen (en particular, las neuronas) y, por consiguiente, para las enfermedades neurodegenerativas de larga latencia [ 207 , 208 ].
La proteína transmembrana del grupo de diferenciación 147 (CD147), una nueva vía de entrada para la infección por SARS-CoV-2 a las células huésped, está correlacionada con varios tipos de cáncer.
Recientemente, se propuso una nueva ruta de entrada del SARS-CoV-2, a saber, la utilización de la glicoproteína transmembrana CD147 [ 209 ]. A pesar de la menor afinidad hacia la proteína de pico del SARS-CoV-2, en comparación con ACE2, el CD147 podría ser un receptor complementario en la mediación de la infección por el virus [ 210 ]. Aunque actualmente falta evidencia inequívoca que respalde una interacción directa entre la proteína de pico y el CD147 [ 211 ], la confirmación del CD147 como un nuevo objetivo viral del SARS-CoV-2 podría tener serias implicaciones para los pacientes oncológicos. El CD147 se ha correlacionado con varios tipos de cáncer [ 212 , 213 ] y se ha demostrado que participa en la regulación positiva del microambiente tumoral y la progresión del cáncer mediante varios mecanismos, a saber, el control de la glucólisis y su conocida capacidad para inducir proteinasas que conducen a la degradación de la matriz, la invasión de células tumorales, la metástasis y la angiogénesis [ 214 ]. Como se describió previamente para ACE2, la posible interacción de la glicoproteína de pico del SARS-CoV-2 con los receptores CD147 podría, a través de la activación de vías tumorigénicas, allanar el camino para la progresión y/o recurrencia del cáncer.
Consideración de la vacunación contra la COVID-19 en personas con cáncer o antecedentes de cáncer
La vacunación contra la COVID-19 es la mayor campaña de inmunización de emergencia jamás intentada en la historia de la humanidad [ 215 ]. Aunque la pandemia ha desaparecido en gran medida del discurso público, aproximadamente entre 2000 y 3000 estadounidenses siguen muriendo de COVID-19 cada semana [ 216 ], y se observa la misma tendencia en el Reino Unido [ 217 ], posiblemente porque algunos colectivos (es decir, personas mayores, personas con comorbilidades e individuos inmunodeprimidos) todavía enfrentan un alto riesgo de enfermedad grave, particularmente ahora que casi todos los sectores de la sociedad han vuelto a la normalidad. Por lo tanto, la protección de millones de personas sigue siendo un enorme desafío y una gran responsabilidad. Si bien las vacunas pueden haber tenido un impacto significativo en la prevención de muertes, los resultados de salud graves de las vacunas pueden pasar desapercibidos en los ensayos clínicos o en los sistemas de vigilancia pasiva como el VAERS, especialmente si son de latencia media o larga y no requieren hospitalización inmediata. En este contexto, hemos demostrado que las vacunas basadas en la glicoproteína de la espiga del SARS-CoV-2 tienen el potencial de interactuar con proteínas supresoras de tumores, promover la inflamación, activar vías oncogénicas y alterar el ajuste fino de la respuesta inmunitaria. Estos mecanismos desregulados y vías de señalización subyacen a la mayoría de los tipos de cáncer. Además, el potencial genotóxico de la espiga se estudió recientemente en adultos guppy ( Poecilia reticulata , también conocido como pez millón o pez arcoíris) expuestos a fragmentos de la espiga del SARS-CoV-2 dispersos en agua dulce [ 218 ]. La exposición a estos péptidos indujo inestabilidad genómica y daño del ADN en los eritrocitos circulantes de P. reticulata , que estaban en correlación con un desequilibrio redox marcado por el aumento de los niveles de malondialdehído (MDA) en el hígado y el cerebro, así como por la supresión de la actividad antioxidante de la superóxido dismutasa hepática (SOD) y la catalasa (CAT).
Si bien entendemos que gran parte del debate sobre el cáncer y la vacunación contra la COVID-19 se realizó bajo alta presión para proteger a esta cohorte de enfermedades graves y la muerte, se necesita urgentemente una evaluación de riesgos y beneficios más equilibrada. Esto es especialmente relevante para las personas con respuestas inmunitarias deficientes, como las que padecen neoplasias hematológicas [ 219 , 220 ], para las que los beneficios de la vacunación son dudosos y se desconocen los riesgos acumulativos de los refuerzos sucesivos (aunque posiblemente aumenten con cada dosis recibida). De particular preocupación es la observación de que algunos fármacos contra el cáncer hacen que las vacunas contra la COVID-19 sean ineficaces [ 221 , 222 ]. Además, la coadministración de regímenes complejos contra el cáncer y las vacunas contra la COVID-19 [ 222-224 ] podría allanar el camino para efectos tóxicos intercurrentes o sinérgicos . De hecho, un artículo reciente [ 224 ] sobre los efectos de la vacuna BNT162b2 en pacientes oncológicos bajo inhibidores de puntos de control (CPI) describe que la inmunoterapia con CPI resultó en un aumento constante y variable de todos los efectos secundarios de la vacunación contra la COVID-19, lo cual es alarmante. Por lo tanto, existe la preocupación de que el uso simultáneo de inmunoterapia y vacunas contra la COVID-19 potencie la respuesta inmunitaria del cuerpo, lo que resulta en un aumento de los eventos adversos relacionados con el sistema inmunitario. Además, la linfadenopatía axilar reactiva secundaria a las vacunas contra la COVID-19 puede imitar la metástasis del cáncer, lo que plantea un dilema diagnóstico y aumenta la ansiedad en pacientes con cáncer de mama, cánceres de cabeza y cuello, linfoma y melanoma de la espalda y las extremidades superiores, que son todas neoplasias malignas que tienen predilección por hacer metástasis en estas estaciones de ganglios linfáticos [ 225-229 ] . Precisamente, una clínica de mama en Israel informó recientemente un aumento del 394% en las linfadenopatías en comparación con años anteriores, y un estudio que incluyó a 169 pacientes israelíes sometidos a una tomografía por emisión de positrones-tomografía computarizada (PET-CT) 7-10 semanas después de recibir la segunda dosis de la vacuna BNT162b describió linfadenopatía unilateral persistente en el 29% de los pacientes [ 225 ]. Por el contrario, se han informado algunos casos raros de remisión temporal o prolongada del cáncer después de la COVID-19 [ 230 ] y la vacunación contra la COVID-19 basada en ARNm [ 231 ], posiblemente como resultado de la intensa respuesta inmunoinflamatoria que puede haber provocado la inmunidad anticancerígena en estos individuos. En general, el cáncer es una de las enfermedades humanas más complejas, heterogéneas y dinámicas [ 232 , 233 ], y como tal, un enfoque universal de “talla única” es defectuoso.
Lamentablemente, la mayoría de las estadísticas actuales sobre cáncer a nivel mundial (es decir, Japón, Australia, Canadá y Europa) no se extienden más allá de 2020 [ 234-239 ] , a menos que sean estimaciones o proyecciones. Esto hace imperativo construir bases de datos globales de farmacovigilancia que ayuden a tomar decisiones basadas en la mejor evidencia disponible en cada momento. En los EE. UU., del 7 de enero de 2018 al 2 de julio de 2022, los Informes Semanales de Mortalidad y Morbilidad (MMWR) de los CDC registraron aproximadamente 13 000 muertes por cáncer por semana (rango: 12 221-14 845), con picos en enero de 2021 (14 284 muertes) y enero de 2022 (14 845 muertes) [ 240 ]. Si bien la agencia de salud pública especificó que el número de muertes por cáncer (con cáncer como causa subyacente) aumentó ligeramente entre 2018 y 2022, atribuyó principalmente el exceso de muertes por cáncer a causas subyacentes no cancerosas, como la COVID-19. Indiscutiblemente, los picos de mortalidad por cáncer observados en 2021 y 2022 se correlacionan bien con los picos invernales de COVID-19. Sin embargo, también siguen a dos importantes campañas de vacunación y refuerzo contra la COVID-19. Como se mencionó anteriormente, tanto las vacunas contra el SARS-CoV-2 como las vacunas basadas en la proteína de la espícula del SARS-CoV-2 promueven la producción de la espícula dentro de las células humanas, lo que, a la luz de lo anterior, podría facilitar la transformación maligna. Los registros caóticos de muertes durante las olas pandémicas también podrían haber creado una distorsión de los hechos, desviando los esfuerzos para prevenir las principales causas de muerte por cáncer (y otras). Cabe destacar que las investigaciones han descubierto que, incluso en circunstancias normales, los errores críticos en los certificados de defunción son bastante comunes en los EE. UU., con una frecuencia de errores que varía entre el 18 % y el 85 % o más en estudios realizados en hospitales [ 241 ].
En resumen, a pesar de que muchas instituciones [ 242 , 243 ] y autores [ 244 , 245 ] sostienen que las vacunas contra la COVID-19 son seguras y (parcialmente) eficaces en pacientes con cáncer, estas afirmaciones no están respaldadas y las recomendaciones se infieren en gran medida de la seguridad y la eficacia de las vacunas en la población general, el rendimiento de otras vacunas en pacientes con cáncer y las alteraciones inmunitarias inherentes a los tratamientos actuales contra el cáncer [ 246 ]. Dada la evidencia convergente de asociación temporal y plausibilidad biológica, la contribución de las vacunas genéticas contra la COVID-19 a la progresión y recurrencia del cáncer no se puede excluir en la actualidad. Sin embargo, se podría argumentar que el potencial oncogénico de la espiga también debería ejercerse durante la infección por SARS-CoV-2. Si bien esto es parcialmente cierto, ya discutimos que las vacunas genéticas contra la COVID-19 y, en particular, las inyecciones de ARNm son radicalmente diferentes de la infección viral por SARS-CoV-2. Por lo tanto, el papel de la vacunación contra la COVID-19 y la infección por SARS-CoV-2 en las vías que potencialmente promueven la malignidad podría no ser comparable y amerita mayor investigación. Además, si el daño se puede atribuir de forma concluyente al propio vehículo LNP o al ARNm sintético modificado (independientemente de la toxicidad, o la ausencia de ella, de la proteína espiga), esto podría tener implicaciones para el desarrollo de nuevos productos de ARNm basados en la misma tecnología central [ 247 ].
En vista del estado actual de la técnica, nuestra sugerencia es que las personas con cáncer o antecedentes de cáncer deberían recibir las vacunas genéticas contra la COVID-19 solo si los beneficios superan claramente cualquier riesgo y después de una evaluación cuidadosa caso por caso. Lo más importante es que existe la posibilidad de que el riesgo de cáncer dependa de la dosis. Según el “modelo de carcinogénesis de múltiples impactos” propuesto por Sutherland y Bailer [ 248 ], se necesitan múltiples impactos o agresiones diferentes a las células y su maquinaria genética para hacer que una célula normal se vuelva cancerosa. Dado que las vacunas contra la COVID-19 no son una serie primaria de protección, sino inyecciones periódicas (cada seis meses) sin ningún punto de parada, es posible que solo aquellos con múltiples inmunizaciones (y/o alto riesgo de cáncer o recaída del cáncer) tengan un mayor riesgo de malignidad. La investigación clínica y básica multidisciplinaria que compare la base celular y molecular de los efectos oncogénicos inducidos por la COVID-19 y la vacuna contra la COVID-19 puede ayudar a reequilibrar el perfil de riesgo/beneficio de estos productos. Los enfoques directos, como el uso de modelos animales, deberían aprovechar el reciente desarrollo de ratones que expresan receptores ACE2 humanos [ 249 , 250 ] y la disponibilidad de modelos murinos de cáncer [ 250 ]. Se recomienda encarecidamente realizar estudios que investiguen la eficacia y la seguridad de la vacunación contra la COVID-19 en pacientes con cáncer, tanto prospectiva como retrospectivamente. Los factores asociados al paciente y al tratamiento merecen una consideración específica. Otros autores han señalado la necesidad de bases de datos más fiables que incluyan parámetros inmunitarios ampliamente medidos, así como datos sobre los niveles de proteína de espiga en sangre [ 251 ]. En conjunto, estos estudios deberían proporcionar datos sólidos para orientar la implementación clínica, incluido el desarrollo de alternativas terapéuticas (es decir, LNP con química diferente, una forma cerrada de pico no propensa a la unión de ACE2 [ 252 ], vacunas dirigidas sin pico [ 253 ], plataformas como COH04S1 [ 254 ] con alta tolerabilidad e inmunogenicidad en individuos inmunodeprimidos, intervenciones no farmacológicas [ 255 ], etc.), para aquellos que no se benefician de la vacunación activa contra la COVID-19 (y aquellos que son alérgicos a algunos de los componentes de la vacuna).
Conclusiones
Esta revisión exhaustiva de la literatura tiene como objetivo destacar el potencial de las vacunas genéticas contra la COVID-19, en particular las vacunas de ARNm, para cumplir con la hipótesis de oncogénesis multi-golpe, propuesta originalmente por Sutherland y Bailor en 1984, ya que generan un entorno pro-tumorigénico favorable a la progresión del cáncer y/o la recurrencia (metastásica). Demostrar que esta potencialidad es errónea es un paso necesario para cumplir con el primer principio de la medicina: “primum non nocere” (“primero, no hacer daño”). De hecho, todas las crisis globales plantean enormes desafíos para la salud y el bienestar; sin embargo, tales excepcionalidades no deberían justificar la reducción de los estándares científicos. Esto es particularmente relevante para los medicamentos profilácticos destinados a proteger a las poblaciones vulnerables de alto riesgo en todo el mundo. Precisamente, el éxito de las nuevas vacunas basadas en ARNm contra la COVID-19 ha generado un interés generalizado en la tecnología del ARNm como solución para algunas de las enfermedades infecciosas más mortales (es decir, la malaria, la tuberculosis y el VIH/SIDA), para las cuales se necesita urgentemente una vacuna eficaz y de fácil implementación. Sin embargo, debido a que algunos de los mecanismos prooncogénicos descritos son independientes del antígeno, las preocupaciones de seguridad actuales deben abordarse rápidamente antes de que las nanomedicinas basadas en ARNm transformen aún más la forma en que se manejan y previenen las enfermedades en el futuro.
Expresiones de gratitud
Agradecemos a Valerie S. Palmer (Departamento de Neurología, Universidad de Salud y Ciencias de Oregón, Portland, OR, EE. UU.; Fundación de Investigación Médica del Tercer Mundo, Portland, OR, EE. UU.) por su generoso e inquebrantable apoyo. Agradecemos al Dr. Peter S. Spencer (Departamento de Neurología, Universidad de Salud y Ciencias de Oregón, Portland, OR, EE. UU.) por la útil discusión. Agradecemos a Enric Baya Castells por ser el impulsor de este estudio.
Los autores han declarado que no existen intereses en conflicto.